文献综述|短链脂肪酸如何通过GPR43/GPR41受体调节肾脏炎症
肠-肾轴已经成为慢性肾脏病、狼疮肾炎领域的热点研究方向。短链脂肪酸(SCFA,丁酸、丙酸、乙酸)作为肠道菌群发酵膳食纤维的重要代谢产物,也是肠-肾轴最重要的信号分子之一。
近年来,多篇分别发表于 Nature Communications、JASN 等期刊的基础实验与临床队列研究,逐步拼凑出一套机制图景:不同类型的短链脂肪酸,可分别通过 GPR43(FFAR2)、GPR41(FFAR3)以及 GPR109A(HCAR2)等受体,从「炎症抑制」与「血流动力学调节」两个维度参与肾脏损伤调控;同时多项 CKD 临床队列观察到粪便 SCFA 水平与肾功能指标存在相关性。
值得注意:上述证据分散在不同课题组的多项研究中,目前尚无单篇整合全部细胞、动物、大规模临床队列的一体化研究。本文整合现有公开研究证据,逐一剖析肠-肾轴科研进展,厘清科研发现与临床实践之间的边界。
短链脂肪酸(SCFA)是肠道有益菌群发酵膳食纤维生成的关键代谢物,主要包含丁酸、丙酸、乙酸。
既往大量观察性研究已经发现若干临床现象:
部分CKD、狼疮肾炎、IgA 肾病患者肠道产SCFA 菌群丰度下降,粪便、外周血 SCFA 浓度大多低于健康人群;
SCFA 可以穿越肠道屏障进入外周血液循环,到达肾脏组织;肾脏多种细胞可表达游离脂肪酸受体 GPR43(FFAR2)、GPR41(FFAR3),为 SCFA 直接作用于肾脏组织提供了分子基础。不过其细胞特异性分布与表达水平尚存异质性:人肾活检免疫组化显示 GPR41 与 GPR43 蛋白主要定位于远端小管与集合管[9];GPR41 在小阻力血管中的定位证据相对充分[5],而 GPR43 在血管平滑肌细胞的直接定位证据仍较薄弱。此外,肾脏还表达丁酸的另一受体 GPR109A(HCAR2),其在肾小球足细胞中呈高表达[7]
体外细胞实验反复观察到 SCFA 具备抑制肾脏炎症的潜力,但丁酸、丙酸两类主要 SCFA 是否存在功能分工、体内真实效应、临床人群的因果关系,依旧存在诸多疑问。
临床科研中长期待解答的核心问题:
丁酸、丙酸两种结构相近的 SCFA,对肾脏的保护效应是否完全一致?
SCFA 对肾脏的影响,是以调控炎症反应为主,还是同时参与肾脏血流调节?
在 CKD 真实患者人群中,SCFA 水平和 eGFR 究竟存在怎样的关联?
围绕以上疑问,不同团队分别从细胞实验、基因编辑动物模型、临床代谢组队列三个方向开展研究,逐步完善证据链条。
那么从现有证据来源分析,我们能看到什么提示?
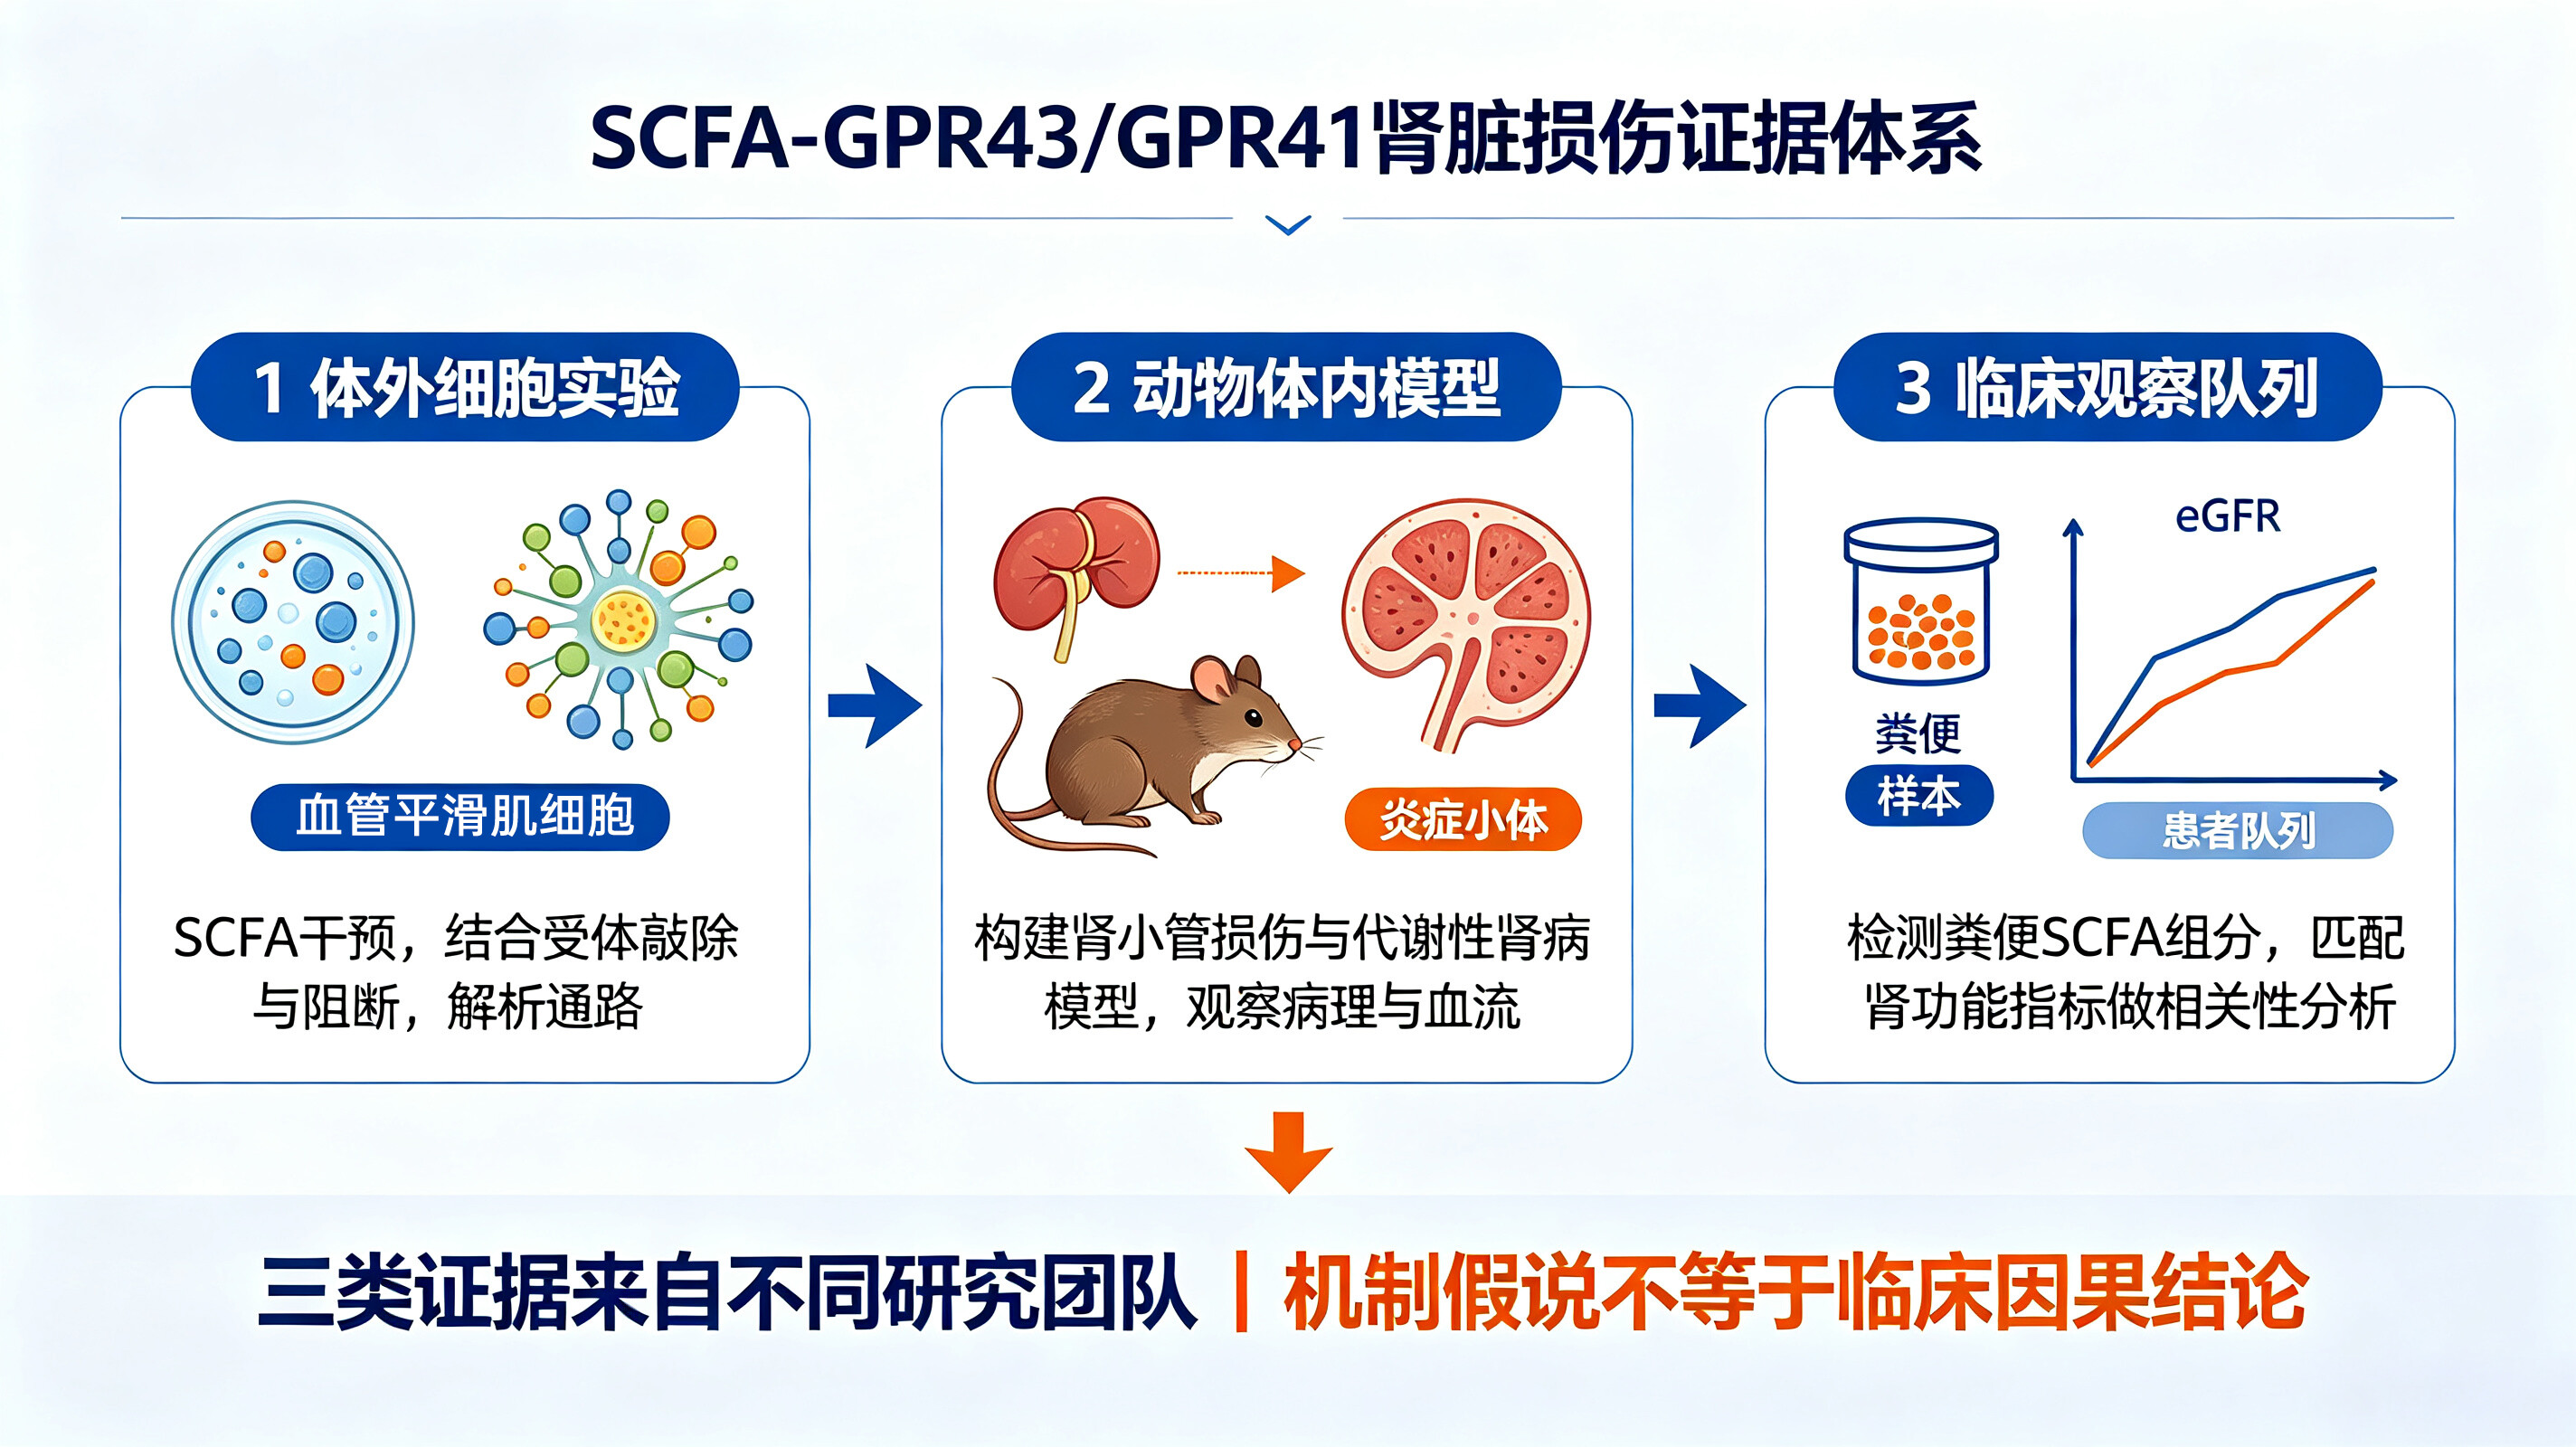
目前关于 SCFA-GPR43/GPR41 与肾脏损伤的证据体系分为三大板块,来自不同研究团队,并非来自同一篇原始论文:
1. 体外细胞实验:人源肾小管上皮细胞、肾小球系膜细胞、足细胞及血管细胞开展 SCFA 干预,结合受体基因沉默、受体激动剂/阻断剂,解析受体依赖的分子通路;
2. 动物体内模型:构建肾小管损伤、代谢性肾病、肾切除 CKD 小鼠模型,结合 GPR43、GPR41、GPR109A 全基因敲除 / 组织特异性敲低,分别补充丁酸钠、丙酸或高纤维饮食,观察肾脏病理、炎症因子表达、纤维化程度及血流动力学指标变化;
3. 临床观察队列:多组不同分期 CKD 患者的粪便与血清代谢组研究,检测 SCFA 组分,匹配患者 eGFR、尿蛋白、基础病史资料,开展相关性统计分析。
重要提示:现有临床证据全部属于观察相关性队列,并非干预类 RCT 临床试验。
那现有研究发现了什么?
1、丁酸钠:经多受体参与肾脏炎症与损伤调控,受体归属具细胞类型特异性
丁酸可同时激活 GPR43、GPR41 与 GPR109A,但对三者的效价存在差异——对 GPR43 的激动效价弱于乙酸与丙酸[1]。现有细胞与动物研究提示,丁酸在肾脏中的作用并非经由单一受体,而是呈现明确的细胞类型特异性:
在肾小管上皮细胞中,高糖条件下丁酸抑制促纤维化基因表达的作用主要经 GPR109A 介导;在足细胞中,丁酸的抗炎与保护作用则经 GPR43 介导[4];而在整体肾脏层面,5/6 肾切除 CKD 模型研究显示,肾脏敲低 GPR43 可阻断丁酸对血肌酐、尿素氮、肾小管损伤评分以及肾脏 Il1b、Il6 表达的改善作用,提示丁酸的肾脏保护存在 GPR43 依赖性成分[8]。
就下游炎症通路而言,丁酸可下调 NLRP3 炎症小体相关分子并减少 IL-1β 释放,在高血压肾病、腺嘌呤诱导 CKD 等模型中减轻肾脏炎症与纤维化;但需注意,这些研究大多未验证 GPR43 的依赖性。而"SCFA 经 GPR43 抑制 NLRP3"的直接证据目前主要来自乙酸与巨噬细胞体系;有趣的是,在结肠上皮中 GPR43 信号反而促进 NLRP3 炎症小体活化,以维护肠屏障完整性[2]——这与肾脏语境下的方向恰好相反,引用时须区分组织背景。
在蛋白尿方面,阿霉素肾病模型研究显示,丁酸经 GPR109A 保护足细胞与肾小球基底膜,可显著降低蛋白尿并减轻肾小球硬化[7]。
关键点:丁酸的抗炎与抗纤维化效应在肾脏中证据较为扎实,且同时覆盖肾小管与肾小球/足细胞;但"丁酸→肾小管上皮 GPR43→NLRP3"这一完整链路目前尚缺乏在同一体系内的直接证据,受体归属与下游通路的对应关系有待细胞特异性敲除研究进一步厘清。
2、丙酸:经 GPR41 参与血管张力与血压调节,肾脏血流层面的直接证据仍有限
先作一点说明:GPR41 同属 SCFA 受体家族,乙酸、丁酸等均可作为其配体,丙酸并非其唯一配体;同时丙酸亦可激活 GPR43。因此本节描述的是"丙酸与 GPR41 关联最紧密的那部分证据",而非"GPR41 仅被丙酸激活"。
在小鼠中,丙酸可产生急性降压反应,该效应在 Gpr41 基因敲除后消失,甚至在相同剂量下转为轻度升压反应[5];Gpr41 敲除小鼠在基线状态即表现为收缩期高血压与脉搏波传导速度增快。机制研究显示,丙酸经 GPR41 以内皮依赖方式扩张阻力血管[6]。
在肾脏血管层面,球旁器与入球小动脉分布的 Olfr78 受体同样响应丙酸,并通过促进肾素释放而升高血压,与 GPR41 形成方向相反的双向调节,共同缓冲血压波动[5]。
需要保留两点不确定性:一是 GPR41 在血管中的细胞定位仍有争议——早期研究将其定位于小阻力血管平滑肌细胞[5],后续研究则将其定位于血管内皮[6];二是现有证据主要停留在体循环血压与外周阻力血管张力层面,尚缺乏直接测定肾入球/出球小动脉张力或肾脏微循环灌注的研究。
研究启示:不同 SCFA 并非功能同质化物质。现有研究呈现"丁酸相关证据更集中于肾脏炎症与纤维化、丙酸相关证据更集中于血管张力与血压调节"的格局——但这反映的是各研究聚焦点的差异,而非已严格证实的功能分工;且二者在受体谱上存在明显重叠,并非两条完全独立的作用路径。
3、临床队列:CKD 患者 SCFA 水平降低,与肾功能指标呈相关趋势
多项独立 CKD 粪便与血清代谢组队列观察发现:CKD 患者粪便及血清中乙酸、丙酸、丁酸水平普遍低于健康对照,CKD 5 期患者粪便丁酸浓度可不足健康人的一半;产丁酸菌(Faecalibacterium prausnitzii、Roseburia、Butyricicoccus 等)丰度随 CKD 进展下降,其丰度与 eGFR 呈正相关。多数研究报告 SCFA 水平与 eGFR 呈正相关趋势,但部分亚组在多重校正后显著性减弱,且粪便与血清样本、不同 CKD 分期构成之间的结论不完全一致。
但绝大多数文献原文着重强调:该结果仅为相关性,不能推导因果关系。存在两种合理解释:①肠道 SCFA 生成不足,通过肠-肾轴机制参与肾功能损伤进展;②肾功能下降之后,全身代谢紊乱继发改变肠道微生态,造成产 SCFA 菌群丰度下降。
因此不能简单解读为:只要外源性补充 SCFA,就可以直接提升 eGFR。
现有证据体系的亮点与局限
证据体系亮点:
1. 提示不同 SCFA 的效应与靶点存在差异:现有研究分别提示 GPR43、GPR109A 等受体参与 SCFA 相关的肾脏保护作用[3,4,8],并有研究发现 GPR41 与肾脏血流动力学调控相关[5,6];同时肾脏内不同细胞类型(肾小管上皮细胞、足细胞、血管细胞)的受体分布亦不相同,打破"全部短链脂肪酸效应相同"的固有认知;
2. 基因缺失动物模型佐证受体依赖性效应:基因缺失动物模型为部分 SCFA-受体相关效应提供了受体依赖性证据,提示上述效应中有相当部分为受体介导;但 SCFA 同时具有非受体作用机制(如 HDAC 抑制),不能据此排除其他作用途径;
3. 基础机制与真实世界 CKD 患者代谢组队列相互呼应,把体外、动物实验与临床人群现象建立关联,为后续干预研究提供明确靶点方向。
现有证据体系的关键局限(临床医生需要重点关注)
1. 临床证据为相关性,缺乏干预 RCT:现有队列仅能看到"SCFA 水平与 eGFR 相关";目前仍缺少高质量临床试验证明:外源性补充 SCFA 或者产 SCFA 益生菌,可以改善 eGFR、逆转肾损伤、降低肾脏硬终点事件。相关性≠因果,机制假说不等于临床疗效。
2. 动物模型的疾病局限性:现有动物实验多为化学诱导肾小管损伤、代谢性肾病或肾切除模型,并不能完全复刻狼疮肾炎、IgA 肾病等免疫介导肾小球疾病的完整病理过程;在免疫性肾病中,SCFA 相关研究目前多停留在菌群丰度与代谢组描述层面。
3. 检测样本与靶器官暴露存在差异:粪便 SCFA 检测水平,不能直接等同于到达肾脏组织的实际有效暴露浓度;口服补充产 SCFA 菌株后,人体肠道代谢、入血、到达肾脏的完整药代动力学数据依旧缺失。此外,外周血 SCFA 峰值浓度与受体 EC50 之间存在数量级差距,其"直接激活肾脏受体"的浓度基础仍有争议。
4. 人体肠道菌群个体异质性极强:相同菌株,定植在不同患者肠道环境中,合成 SCFA 的产出能力差异巨大;不能简单等同于"使用该菌株,体内就一定稳定产生目标浓度 SCFA"。
5. 受体定位与配体归属仍存分歧:GPR41/43 在肾脏各类细胞中的精确定位、丁酸在肾小管的受体归属(GPR109A 为主抑或 GPR43 参与)、不同疾病模型间结论的不一致,均提示该领域尚未形成定论。
那么对于临床转化有什么意义?
——为产 SCFA 益生菌提供理论依据,但仍需审慎看待证据等级
1、机制层面带来的临床启发
现有研究进一步夯实肠-肾轴假说:肠道菌群代谢产物 SCFA,可以通过特异性受体 GPR41/GPR43/GPR109A,可能涉及从「肾脏局部炎症」、「血管张力与血流调节」两个维度参与慢性肾脏病病理过程。
这也可以解释临床上一类常见现象:大量长期使用激素、免疫抑制剂的狼疮肾炎、IgA 肾病患者,肠道菌群紊乱、产 SCFA 能力下降(肠道菌群及代谢状态可能值得关注),伴随腹胀、糊状便等肠道主观主诉可能增多;肠道代谢紊乱有可能间接参与肾脏炎症的调控过程。
2、临床实践边界(面向临床医生的实操建议)
可以借鉴:在慢病随访管理中,把 CKD、免疫相关肾病患者的肠道状态纳入整体评估视角,关注患者肠道主观体感变化;
必须清醒认知:目前尚无高质量 RCT 证实,补充产 SCFA 益生菌可以降低尿蛋白、升高 eGFR、延缓肾功能下降;
现阶段合理定位:产 SCFA 类菌株的膳食营养干预,仅作为改善患者居家肠道体感的辅助管理手段,绝对不能替代激素、免疫抑制剂、降压护肾等标准临床治疗方案;
临床使用原则:是否考虑引入肠道营养干预,需要医生结合患者肠道主诉、菌群背景、基础病情综合个体化评估,不建议普适性推荐。
而后续亟需开展针对免疫肾病人群的干预队列;研究终点需要分层设计,同时区分「改善肠道主观体感」与「改变肾脏硬终点(eGFR、尿蛋白、肾脏预后)」两个不同层级,避免将肠道体感改善直接等同于肾脏获益。
从思立恩复合益生菌的配方设计出发——即产 SCFA 菌株的筛选逻辑,我们尝试构建这样一个科学假说
重要说明:本部分为配方研发学术思路复盘,不做产品功效承诺;不宣称产品可以激活 GPR43/GPR41、改善 eGFR、降低尿蛋白。
基于肠-肾轴现有科研进展,产 SCFA 菌株的筛选不能只简单参考菌种分类学名称。思立恩复合益生菌为合生元固体饮料,完整配方包含复合益生元底物(低聚果糖、菊粉、低聚木糖、乳糖醇)、8株食品级益生菌、酵母 β-葡聚糖、葡萄糖酸锌,麦芽糊精、甜橙粉、针叶樱桃粉作为载体与风味辅料。
配方开发过程中,建立三重筛选维度:
1. 优先考察菌株代谢表型,而非仅看菌种名称
考虑到同一菌种下不同菌株的产酸能力可能存在差异,配方筛选阶段将"体外厌氧模拟肠道环境条件下实测 SCFA 生成谱"列为一项考察维度,优先纳入具备产丁酸/丙酸代谢表型的候选菌株,而非仅依据菌种分类学名称作判断。
底层逻辑:肠-肾轴机制的核心效应物质之一是代谢物 SCFA。相关菌株可作为影响肠道 SCFA ⽣成的因素之⼀【只是⽣产载体过度简化了菌群作⽤。菌株本⾝、菌群⽣态位、底物利⽤和其他代谢产物都可能参与作⽤】
2.复合益生元 + 多菌株搭配,兼顾多通路底物协同
结合现有研究提示丁酸、丙酸在效应聚焦点上存在差异,配方采用多株乳杆菌 + 双歧杆菌的复合菌株组合;同时复配低聚果糖、菊粉、低聚木糖、乳糖醇多元益生元底物(合生元设计),为菌株发酵提供可利用底物。
客观现实约束:人体肠道属于高度复杂的生态系统,体外条件下测得的代谢能力,不等于在不同患者体内一定可以稳定产出目标代谢物,个体差异客观存在。
3.适配免疫肾病人群,安全原则优先,叠加肠道黏膜相关营养辅料
目标适用人群包含狼疮肾炎、IgA 肾病等长期接受激素 / 免疫抑制剂治疗的患者,菌株筛选第一优先级为安全性,全部选用国家卫健委目录内食品级菌株;额外搭配酵母 β‑葡聚糖、有机锌(葡萄糖酸锌),面向激素带来的肠道黏膜扰动做营养层面补充。具体适用人群及临床使用仍需结合产品实际安全性和临床证据进行判断。
综上所述,现有 SCFA-肠-肾轴研究,为产 SCFA 合生元配方的应用提供了有价值的机制假说基础,但不等同于临床疗效证据。思立恩配方顺着肠-肾轴科研方向完成研发设计;但落到临床使用层面,依旧需要回归医生个体化评估,将肠道营养干预作为整体慢病管理中的辅助选项,不可替代肾病标准药物治疗。
免责声明:本文仅为医学学术科普交流,不构成任何临床诊疗建议。文中内容综合体外细胞实验、动物基础研究及观察性临床队列,尚缺少大样本干预 RCT 证据,基础科研假说不能直接等同于临床治疗方案。 临床实践请以临床指南、患者个体病情、主治医生综合判断为准。膳食营养补充制剂不可替代激素、免疫抑制剂、护肾降压等标准药物治疗。
参考文献
[1] Brown A J, Goldsworthy S M, Barnes A A, et al. The orphan G protein-coupled receptors GPR41 and GPR43 are activated by propionate and other short chain carboxylic acids [J]. Journal of Biological Chemistry, 2003, 278(13): 11312-11319.
[2] Macia L, Tan J, Vieira A T, et al. Metabolite-sensing receptors GPR43 and GPR109A facilitate dietary fibre-induced gut homeostasis through regulation of the inflammasome [J]. Nature Communications, 2015, 6: 6734.
[3] Li Y J, Chen X, Kwan T K, et al. Dietary fiber protects against diabetic nephropathy through short-chain fatty acid-mediated activation of G protein-coupled receptors GPR43 and GPR109A [J]. Journal of the American Society of Nephrology, 2020, 31(6): 1267-1281.
[4] Li Y J, Ma J, Loh Y W, et al. Short-chain fatty acids directly exert anti-inflammatory responses in podocytes and tubular epithelial cells exposed to high glucose [J]. Frontiers in Cell and Developmental Biology, 2023, 11: 1182570.
[5] Pluznick J L, Protzko R J, Gevorgyan H, et al. Olfactory receptor responding to gut microbiota-derived signals plays a role in renin secretion and blood pressure regulation [J]. Proceedings of the National Academy of Sciences, 2013, 110(11): 4410-4415.
[6] Natarajan N, Hori D, Flavahan S, et al. Microbial short chain fatty acid metabolites lower blood pressure via endothelial G protein-coupled receptor 41 [J]. Physiological Genomics, 2016, 48(11): 826-834.
[7] Felizardo R J F, de Almeida D C, Pereira R L, et al. Gut microbial metabolite butyrate protects against proteinuric kidney disease through epigenetic- and GPR109a-mediated mechanisms [J]. FASEB Journal, 2019, 33(11): 11894-11908.
[8] Li H B, Xu M L, Xu X D, et al. Faecalibacterium prausnitzii attenuates CKD via butyrate-renal GPR43 axis [J]. Circulation Research, 2022. DOI: 10.1161/CIRCRESAHA.122.320184.
[9] Kobayashi M, Mikami D, Kimura H, et al. Short-chain fatty acids, GPR41 and GPR43 ligands, inhibit TNF-α-induced MCP-1 expression by modulating p38 and JNK signaling pathways in human renal cortical epithelial cells [J]. Biochemical and Biophysical Research Communications, 2017, 486(2): 433-439.
[10] Liu H, Wang J, He T, et al. Short-chain fatty acids and their receptors in chronic kidney disease: from gut to kidney [J]. Frontiers in Physiology, 2022, 13: 926471.